Notícias
Notícias
 Divulgação médico veterinária. Noticias, artigos, fotos, imagens, vídeos, Petclube é o melhor site que vende cães bulldog, pug, rhodesian ridgeback, frenchie bulldog, chihuahua, buldogue campeiro, olde english bulldogge, pitmonster, gatos ragdoll, maine coon , bengal, exotico, persa, com anúncios de divulgação de filhotes de cachorros e gatinhos munchkin toy raríssimos para todo Brasil
wthats 55 11 9386 8744 Juquitiba SP
ARTIGO DE REVISÃO CIENTÍFICA
DISPLASIA COXOFEMORAL FELINA: AUSÊNCIA DE MAPEAMENTO GENÉTICO E O PAPEL DA MASSA CORPORAL — UMA REVISÃO À LUZ DA EVIDÊNCIA ATUAL
Uma análise crítica sobre a herdabilidade quantitativa, correlações biométricas e as limitações na transposição de marcadores genômicos caninos
09 de setembro de 2026
Claudio Amichetti Júnior
Médico-veterinário, Especialista em Nutrição e Foco em Medicina Veterinária Integrativa
1. Resumo
A displasia coxofemoral felina (FHD) configura-se como uma afecção articular ortopédica de relevância clínica e epidemiológica crescente, evidenciando expressiva prevalência em populações de raças de grande porte, com particular destaque para a Maine Coon. A despeito do avanço metodológico observado na genômica animal, a literatura científica veterinária carece integralmente de mapeamento genético consolidado para a espécie felina, inexistindo até o presente ano de 2026 qualquer estudo de associação genômica ampla (GWAS) publicado ou teste genético molecular validado para FHD. O corpus científico basilar na genética da displasia felina fundamenta-se nos achados de Low et al. (2019), os quais reportaram uma herdabilidade moderada de 0,36 e uma correlação genética positiva de 0,285 entre a afecção e a massa corporal em uma coorte longitudinal de 5.038 animais. Torna-se imperativo salientar que estimativas de herdabilidade quantitativa mensuram exclusivamente a proporção da variância fenotípica atribuível a efeitos genéticos aditivos populacionais, não equivalendo à identificação de genes causais, variantes alélicas ou marcadores de suscetibilidade. Simultaneamente, fatores ambientais e de manejo, incluindo a oferta calórica excessiva, a obesidade e a restrição de atividade física, exercem impacto mecânico direto sobre a higidez musculoesquelética sem configurarem causa genética intrínseca da enfermidade. As diretrizes práticas no cenário atual devem priorizar a triagem radiográfica seriada, o controle rigoroso da massa corporal e a seleção fenotípica estruturada de reprodutores, enfatizando a necessidade premente de investigações genômicas robustas e específicas para a espécie felina.
2. Palavras-chave
displasia coxofemoral felina; genética; herdabilidade; Maine Coon; massa corporal; obesidade felina.
3. Abstract and Keywords
Feline hip dysplasia (FHD) represents a clinically and epidemiologically relevant orthopedic condition, presenting marked prevalence among large-breed feline populations, most notably in the Maine Coon breed. Despite contemporary methodological progress in animal genomics, veterinary literature still lacks comprehensive genetic mapping for the feline species, with no published genome-wide association studies (GWAS) or validated molecular genetic screening tests for FHD available up to 2026. The foundational scientific evidence regarding feline hip genetics relies on the investigation by Low et al. (2019), which demonstrated a moderate heritability of 0.36 and a positive genetic correlation of 0.285 between hip dysplasia and body mass across a longitudinal cohort of 5,038 cats. It is crucial to emphasize that quantitative heritability estimates solely reflect the proportion of phenotypic variance attributable to additive genetic variance within a given population, which does not equate to the identification of causal genes, specific loci, or molecular risk variants. Concurrently, environmental factors such as positive energy balance, dietary excess, feline obesity, and reduced physical activity exert direct biomechanical strain on joint homeostasis without constituting direct genetic drivers of the pathology. Current veterinary management must therefore rely on standardized radiographic screening, systematic body weight regulation, and rigorous phenotypic selective breeding, highlighting the essential requirement for future feline-specific genomic investigations.
Keywords: feline hip dysplasia; genetics; heritability; Maine Coon; body mass; feline obesity.
4. Introdução
A displasia coxofemoral é classicamente reconhecida na medicina veterinária como uma doença de desenvolvimento osteoarticular complexa, dotada de etiologia poligênica e caráter multifatorial. Caracterizada pela incongruência articular progressiva entre a cabeça femoral e a fossa acetabular, a condição resulta em frouxidão ligamentar precoce, remodelamento ósseo anômalo e subsequente desenvolvimento de osteoartrite degenerativa secundária.
Historicamente abordada sob o prisma da clínica canina, a afecção assumiu nos últimos anos uma posição de destaque na medicina felina, decorrente do aprimoramento dos exames de imagem e da expansão demográfica de raças de compleição física expressiva, como o Maine Coon. Contudo, o avanço do interesse clínico tem sido acompanhado por equívocos conceituais na comunicação técnico-científica, na qual se dissemina frequentemente a noção precipitada de que existiria um "gene da displasia felina" identificado ou mapeado em laboratório.
Essa assunção infundada decorre da extrapolação indevida de dados provenientes da genômica canina ou da má interpretação de parâmetros quantitativos populacionais. A ausência de suporte na literatura indexada para a existência de marcadores genômicos comerciais na espécie felina impõe a necessidade premente de uma revisão crítica rigorosa, estabelecendo a distinção técnica entre herdabilidade biométrica, arquitetura genética e a real influência da massa corporal no desfecho patológico da articulação coxofemoral em gatos.
5. Displasia Coxofemoral Felina: Conceito e Epidemiologia
A displasia coxofemoral felina consiste em uma conformação biomecânica defeituosa da juntura sinovial coxofemoral, na qual a contenção do fêmur proximal pelo acetábulo é estruturalmente insuficiente. Durante a fase de crescimento esquelético, a instabilidade da articulação promove desgaste precoce da cartilagem hialina, espessamento da cápsula articular, remodelamento das margens acetabulares e deposição osteofítica periatricular, culminando em degeneração e dor crônica.
No âmbito epidemiológico, o estudo populacional de maior escala conduzido na espécie felina foi desenvolvido por Low et al. (2019), avaliando registros oficiais de um programa sueco de controle radiográfico. A análise constatou uma prevalência de 37,4% de animais afetados por displasia coxofemoral em algum grau dentro de uma população de Maine Coons, estabelecendo um índice epidemiológico representativo para gatos de estrutura corporal pesada.
As análises demonstraram a ausência de predileção estatística quanto ao sexo dos indivíduos acometidos, indicando distribuição homogênea entre machos e fêmeas. Por outro lado, observou-se uma correlação estatisticamente significante entre o agravamento radiográfico das lesões articulares, o avanço da idade cronológica dos pacientes e o incremento da massa corporal total, denotando que o peso sustentado pela estrutura esquelética atua de forma decisiva na expressão da gravidade fenotípica.
6. Herdabilidade Versus Mapeamento Genético: Distinção Conceitual
A correta interpretação da literatura veterinária requer a distinção conceitual entre os parâmetros da genética quantitativa e as abordagens da genômica molecular. A herdabilidade em sentido restrito (h2) quantifica unicamente a proporção da variação fenotípica observada em uma dada população que é atribuível à variância genética aditiva global, expressando-se em uma escala matemática contínua entre 0 e 1. A determinação de um coeficiente de herdabilidade confirma que a característica fenotípica possui base hereditária mensurável, mas não elucida quais cromossomos, loci ou sequências nucleotídicas estão envolvidos no processo.
Por conseguinte, a estimativa quantitativa de herdabilidade é intrinsecamente dependente da estrutura populacional, do pedigree e da homogeneidade ambiental da coorte avaliada, não equivalendo sob nenhuma hipótese ao mapeamento genético. A caracterização da arquitetura genômica de uma afecção complexa demanda a realização de estudos de associação genômica ampla (GWAS) com densidade adequada de polimorfismos de nucleotídeo único (SNPs), com vistas a detectar associações estatísticas entre variantes genômicas e a manifestação da enfermidade.
Adicionalmente, a validação de um mapa genético de risco requer etapas subsequentes rigorosas: a identificação e refinamento de loci de características quantitativas (QTL), a replicação dos achados em coortes geograficamente e geneticamente independentes, o sequenciamento profundo de regiões candidatas e a validação funcional dos mecanismos moleculares alterados. Sem o cumprimento sistemático dessas etapas, a inferência de casualidade gênica carece de sustentação científica.
7. Evidências Atuais na Espécie Felina
A principal base de evidência empírica relativa à genética da displasia coxofemoral em felinos repousa no trabalho longitudinal publicado por Low et al. (2019) no periódico Scientific Reports. O estudo analisou um banco de dados estruturado ao longo de vinte anos (1993 a 2013), congregando 5.038 gatos da raça Maine Coon submetidos à avaliação radiográfica ventrodorsal padronizada segundo os critérios de triagem da organização sueca PawPeds.
Por intermédio da aplicação de modelos lineares mistos em matriz genealógica completa, os autores estimaram o coeficiente de herdabilidade da conformação coxofemoral em 0,36(com intervalo de confiança de 95% entre 0,30 e 0,43), atestando a presença de influência genética aditiva moderada. O achado de maior repercussão biológica da referida investigação foi a constatação de uma correlação genética positiva de 0,285entre a pontuação de displasia coxofemoral e a massa corporal dos felinos.
Essa correlação indica que os alelos associados ao maior potencial de crescimento e tamanho corpóreo segregam de maneira correlacionada àqueles que predispõem à incongruência articular. Sob a perspectiva da resposta à pressão seletiva, o estudo revelou que os acasalamentos direcionados à redução da displasia promoveram um decréscimo na gravidade fenotípica ao longo das gerações acompanhado de uma diminuição média de massa corporal da ordem de 33 gramas por geração nos descendentes.
Fica demonstrado que a seleção artificial voltada exclusivamente à ampliação do porte físico e do peso em gatos Maine Coon atua concomitantemente como fator de seleção indireta para maior severidade e prevalência de displasia coxofemoral. Tais achados motivaram alertas explícitos dos pesquisadores contra diretrizes de padrões raciais e práticas de criação que celebrem ou incentivem a obtenção de indivíduos com dimensões corporais desmedidas.
8. Ausência de Mapeamento Genético Felino e o Contraste com a Espécie Canina
Até o presente ano de 2026, não foi publicado nenhum estudo de associação genômica ampla (GWAS) específico para a displasia coxofemoral em felinos, persistindo a ausência absoluta de genes causais mapeados ou painéis de diagnóstico molecular comerciais aplicáveis a essa espécie. Esse cenário contrasta de modo marcante com os avanços observados na espécie canina, onde a arquitetura genética da displasia articular vem sendo dissecada por múltiplos grupos de pesquisa nas últimas duas décadas.
Na literatura canina, diversas variantes e regiões funcionais foram identificadas e associadas à afecção. Friedenberg et al. (2011) descreveram uma deleção em haplótipo regulatório do gene da fibrilina-2 (FBN2) associada à frouxidão articular e osteoartrite precoce em cães da raça Labrador Retriever e outras linhagens. Subsequentemente, Lavrijsen et al. (2014) demonstraram o envolvimento de genes estruturais da matriz extracelular e da cartilagem articular em populações holandesas de Labradores, apontando como candidatos os genes COL6A3, COMP, CILP2, LAMA2, LRR1 e GDF15.
Em acréscimo, investigações em populações britânicas de Labradores conduzidas por Sánchez-Molano et al. (2014) revelaram que variações quantitativas no ângulo de Norberg associam-se a intervalos genômicos contendo genes de colágeno basal, especificamente COL4A3 e COL4A4. Na raça Pastor Alemão, Mikkola et al. (2019) identificaram variantes estruturais protetoras e de risco em elementos reguladores do gene Noggin (NOG), o qual atua no controle da sinalização das proteínas morfogenéticas ósseas (BMPs) durante a osteogênese e condrogênese.
Mais recentemente, análises genômicas across-raças fundamentadas em sequenciamento de genoma completo executadas por Binversie et al. (2022) elucidaram o envolvimento de citocinas inflamatórias centrais, como a interleucina-1 alfa e beta (IL1A e IL1B), além de novos candidatos estruturais e de transdução celular, a exemplo de FBXO25, COL27A1 e SPRED2. Outrossim, estudos de validação multirracial consolidaram 21 loci distribuídos em 14 cromossomos caninos, demonstrando o enriquecimento biológico funcional da via bioquímica de nedilação proteica na etiopatogenia da displasia (BMC Genomics, 2021; Bartolomé et al., 2015).
É imperativo enfatizar que todo esse corpo conceitual e genômico pertence exclusivamente ao genoma canino (*Canis lupus familiaris*). A despeito da semelhança clínica e radiológica do processo degenerativo entre as duas espécies, a transposição direta desses genes candidatos para o genoma felino (*Felis catus*) é desprovida de rigor metodológico, constituindo uma inferência biologicamente infundada na ausência de estudos empíricos confirmatórios na espécie de destino.
9. Fatores Ambientais: Obesidade, Dieta e Manejo
A despeito da contribuição da herdabilidade aditiva, a manifestação e a taxa de progressão da displasia coxofemoral em felinos dependem intrinsecamente de variáveis ambientais e de manejo nutricional. O fornecimento dietético energeticamente denso e a oferta alimentar irrestrita *ad libitum* configuram os principais fatores desencadeantes do balanço energético positivo em gatos confinados em ambiente estritamente domiciliário.
O sobrepeso e a obesidade felina acarretam uma sobrecarga estática e dinâmica desproporcional sobre as articulações coxofemorais, acelerando a perda da integridade das superfícies cartilagíneas e deflagrando microtraumatismos contínuos. Paralelamente, o sedentarismo e a carência de enriquecimento ambiental verticalizado conduzem à hipotrofia da musculatura abdutora e extensora da cintura pélvica, privando a juntura articular da estabilização dinâmica essencial propiciada pelo tônus muscular funcional.
Cumpre assinalar que a obesidade atua igualmente como um indutor inflamatório crônico de baixo grau por via da liberação de adipocinas e mediadores pró-inflamatórios, agravando a degradação sinovial. Todavia, esses elementos configuram estritamente fatores biomecânicos e metabólicos modificáveis no âmbito do manejo diário. A indução ou agravamento do quadro clínico em um animal obeso não se confunde com herança monogênica e jamais deve ser comunicada como causa genética determinante da afecção.
10. Perspectivas e Caminhos para o Avanço Científico
A transição do conhecimento empírico para o domínio da medicina genômica felina translacional demanda a formulação de um plano de pesquisa estruturado. O ponto de partida requer a organização de amplas coortes multicêntricas de felinos caracterizadas por fenotipagem radiográfica de alta precisão, operada por meio de posicionamento padronizado em projeção ventrodorsal e mensurações quantitativas rigorosas, tais como o cálculo do índice de distração e do ângulo de Norberg.
A partir do estabelecimento dessas populações de referência, torna-se indispensável o sequenciamento molecular por meio de plataformas de GWAS desenhadas especificamente para a densidade de desequilíbrio de ligação observada nas raças felinas. Uma vez identificados loci associados ao fenótipo, a literatura exigirá a validação estatística em populações geograficamente dispersas e raças biologicamente heterogêneas, visando discriminar marcadores de efeito geral de variantes restritas a linhagens específicas.
A consolidação desse processo dependerá, por fim, da realização de estudos de validação funcional in vitro e in silico destinados a elucidar como as alterações alélicas identificadas modulam a expressão de componentes da matriz cartilaginosa ou da regulação do tecido conjuntivo. Apenas mediante o cumprimento integral desse itinerário científico será viável cogitar o desenvolvimento de painéis de seleção genômica com valor preditivo e aplicabilidade na rotina clínica e na criação ética.
11. Considerações Práticas para a Clínica e a Criação
No cenário científico vigente, as condutas de manejo preventivo e controle profilático da displasia coxofemoral felina devem apoiar-se em ferramentas de eficácia e utilidade comprovadas. No âmbito da criação, a triagem radiográfica seriada dos indivíduos a partir dos 12 a 24 meses de idade permanece como o único método validado internacionalmente para fins de certificação sanitária e seleção de reprodutores, devendo ser acompanhada pelo afastamento sistemático da reprodução de espécimes acometidos por graus moderados ou severos de incongruência articular.
Para a rotina clínica médico-veterinária, o manejo preventivo e terapêutico deve focar com rigor o controle estrito da massa corporal, prescrevendo programas nutricionais balanceados e ajustados ao gasto calórico individual para prevenir o sobrepeso. O manejo físico através de estímulos ambientais que promovam a movimentação ativa controlada e o ganho de massa muscular pélvica constitui intervenção de suporte mecânico determinante para a estabilidade articular.
Por derradeiro, impõe-se a adoção de um compromisso ético e técnico irrestrito com a comunicação baseada em evidências. Cabe aos médicos-veterinários esclarecer criadores e tutores acerca do caráter multifatorial da afecção, abstendo-se de afirmar ou endossar a existência de testes genéticos preditivos que não possuem validação ou existência no escopo da ciência biomédica atual.
12. Conclusão
A análise da literatura contemporânea atesta a ausência de mapeamento genético ou identificação de genes causais associados à displasia coxofemoral felina até o ano de 2026. A evidência genética disponível na espécie resume-se a parâmetros de genética quantitativa obtidos em populações de gatos da raça Maine Coon, os quais estabelecem uma herdabilidade moderada (h2=0,36) e revelam uma expressiva correlação genética positiva com a massa corporal (rg=0,285).
A herdabilidade quantitativa não se confunde com o mapeamento de genes específicos, evidenciando que a busca deliberada por padrões raciais baseados no gigantismo e na elevação da massa física atua diretamente na ampliação do risco de desordens articulares. Conclui-se que o controle do peso corporal, o manejo ambiental adequado e o diagnóstico radiográfico constituem os pilares primordiais para o controle da afecção, reforçando a urgência da execução de estudos genômicos específicos que preencham as lacunas científicas existentes na espécie felina.
13. Referências
- Low M, Eksell P, Högström K, et al. Demography, heritability and genetic correlation of feline hip dysplasia and response to selection in a health screening programme. Sci Rep. 2019;9:17164. DOI: 10.1038/s41598-019-53904-w.
- Friedenberg SG, Zhu L, Zhang Z, et al. Evaluation of a fibrillin 2 gene haplotype associated with hip dysplasia and incipient osteoarthritis in dogs. Am J Vet Res. 2011;72(4):530-540.
- Zhou Z, Sheng X, Zhang Z, et al. Differential genetic regulation of canine hip dysplasia and osteoarthritis. PLoS One. 2010;5(10):e13219.
- Lavrijsen ICM, Heuven HCM, Voorhout G, et al. Genome wide analysis indicates genes for basement membrane and cartilage matrix proteins as candidates for hip dysplasia in Labrador Retrievers. PLoS One. 2014;9(1):e87735.
- Sánchez-Molano E, Woolliams JA, Pong-Wong R, et al. Quantitative trait loci mapping for canine hip dysplasia and its related traits in UK Labrador Retrievers. BMC Genomics. 2014;15:833.
- Mikkola L, Holopainen S, Lappalainen AK, et al. Novel protective and risk loci in hip dysplasia in German Shepherds. PLoS Genet. 2019;15(7):e1008197.
- Binversie EE, Momen M, Rosa GJM, Davis BW, Muir P. Across-breed genetic investigation of canine hip dysplasia, elbow dysplasia, and anterior cruciate ligament rupture using whole-genome sequencing. Front Genet. 2022;13:913354.
- Validation study across breeds of 46 genetic markers in canine hip dysplasia. BMC Genomics. 2021;22:66. DOI: 10.1186/s12864-021-07375-x.
- Bartolomé N, Segarra S, Artieda M, et al. A genetic predictive model for canine hip dysplasia: integration of genome wide association study (GWAS) and candidate gene approaches. PLoS One. 2015;10(4):e0122558.
Claudio Amichetti Júnior
Médico-veterinário, Especialista em Nutrição
FELINE HIP DYSPLASIA: ABSENCE OF GENETIC MAPPING AND THE ROLE OF BODY MASS — A REVIEW IN LIGHT OF CURRENT EVIDENCE
A critical analysis of quantitative heritability, biometric correlations, and the limitations of transposing canine genomic markers
September 9, 2026
Claudio Amichetti Júnior cmv sp 75404
Veterinarian, Integrative Veterinary Medicine
1. Abstract
Feline hip dysplasia (FHD) represents an orthopedic joint disease of growing clinical and epidemiological relevance, demonstrating a significant prevalence in large-breed cat populations, most notably within the Maine Coon breed. Despite contemporary methodological progress in animal genomics, veterinary scientific literature entirely lacks consolidated genetic mapping for the feline species, with no published genome-wide association studies (GWAS) or validated molecular screening tests for FHD available up to the present year of 2026. The foundational scientific evidence regarding feline hip genetics is based on the findings of Low et al. (2019), who reported a moderate heritability of 0.36 and a positive genetic correlation of 0.285 between the condition and body mass across a longitudinal cohort of 5,038 animals. It is imperative to emphasize that quantitative heritability estimates exclusively measure the proportion of phenotypic variance attributable to additive population genetic effects, which does not equate to the identification of causal genes, allelic variants, or susceptibility markers. Concurrently, environmental and management factors, including excessive caloric intake, feline obesity, and reduced physical activity, exert direct biomechanical stress on musculoskeletal integrity without constituting an intrinsic genetic cause of the disease. Current practical guidelines must prioritize serial radiographic screening, strict body weight management, and structured phenotypic selective breeding, highlighting the pressing need for robust, feline-specific genomic investigations.
2. Keywords
feline hip dysplasia; genetics; heritability; Maine Coon; body mass; feline obesity.
3. English Abstract and Keywords
Feline hip dysplasia (FHD) represents a clinically and epidemiologically relevant orthopedic condition, presenting marked prevalence among large-breed feline populations, most notably in the Maine Coon breed. Despite contemporary methodological progress in animal genomics, veterinary literature still lacks comprehensive genetic mapping for the feline species, with no published genome-wide association studies (GWAS) or validated molecular genetic screening tests for FHD available up to 2026. The foundational scientific evidence regarding feline hip genetics relies on the investigation by Low et al. (2019), which demonstrated a moderate heritability of 0.36 and a positive genetic correlation of 0.285 between hip dysplasia and body mass across a longitudinal cohort of 5,038 cats. It is crucial to emphasize that quantitative heritability estimates solely reflect the proportion of phenotypic variance attributable to additive genetic variance within a given population, which does not equate to the identification of causal genes, specific loci, or molecular risk variants. Concurrently, environmental factors such as positive energy balance, dietary excess, feline obesity, and reduced physical activity exert direct biomechanical strain on joint homeostasis without constituting direct genetic drivers of the pathology. Current veterinary management must therefore rely on standardized radiographic screening, systematic body weight regulation, and rigorous phenotypic selective breeding, highlighting the essential requirement for future feline-specific genomic investigations.
Keywords: feline hip dysplasia; genetics; heritability; Maine Coon; body mass; feline obesity.
4. Introduction
Hip dysplasia is classically recognized in veterinary medicine as a complex developmental osteoarticular disorder characterized by polygenic etiology and multifactorial nature. Defined by progressive joint incongruity between the femoral head and the acetabular fossa, the condition results in early joint laxity, abnormal bone remodeling, and subsequent secondary degenerative osteoarthritis.
Historically approached primarily within canine clinical practice, the condition has gained prominence in feline medicine over recent years due to advancements in diagnostic imaging and the demographic expansion of large-bodied breeds, such as the Maine Coon. However, the rise in clinical interest has been accompanied by conceptual misconceptions in technical and scientific communication, where the premature notion of an identified or laboratory-mapped "feline dysplasia gene" is frequently disseminated.
This unfounded assumption stems from the improper extrapolation of data from canine genomics or the misinterpretation of population quantitative parameters. The absence of indexed scientific literature supporting the existence of commercial genomic markers in the feline species mandates a rigorous critical review, establishing the technical distinction between biometric heritability, genetic architecture, and the actual influence of body mass on the pathological outcome of the feline coxofemoral joint.
5. Feline Hip Dysplasia: Concept and Epidemiology
Feline hip dysplasia consists of a defective biomechanical conformation of the coxofemoral synovial joint, wherein the containment of the proximal femur by the acetabulum is structurally insufficient. During skeletal development, joint instability promotes early wear of hyaline cartilage, thickening of the joint capsule, remodeling of the acetabular rims, and periarticular osteophyte deposition, culminating in chronic degeneration and pain.
Epidemiologically, the largest population-scale study conducted in the feline species was carried out by Low et al. (2019), evaluating official records from a Swedish radiographic health screening program. The analysis identified a prevalence of 37.4% of animals affected by hip dysplasia to some degree within a Maine Coon population, establishing a representative epidemiological benchmark for heavy-structured cats.
Statistical analyses demonstrated no sex predilection among affected individuals, indicating a homogeneous distribution between males and females. Conversely, a statistically significant correlation was observed between the radiographic worsening of joint lesions, advancing chronological age, and increasing total body mass, demonstrating that the mechanical weight sustained by the skeletal framework plays a decisive role in the expression of phenotypic severity.
6. Heritability Versus Genetic Mapping: Conceptual Distinction
The accurate interpretation of veterinary literature requires a clear conceptual distinction between quantitative genetic parameters and molecular genomic approaches. Narrow-sense heritability (
h2
) solely quantifies the proportion of observed phenotypic variation in a given population that is attributable to global additive genetic variance, expressed on a continuous mathematical scale between 0 and 1. Determining a heritability coefficient confirms that a phenotypic trait possesses a measurable hereditary basis, but does not elucidate which chromosomes, loci, or nucleotide sequences are involved in the biological process.
Consequently, quantitative heritability estimates are intrinsically dependent on population structure, pedigree depth, and the environmental homogeneity of the evaluated cohort, and under no circumstances equate to genetic mapping. Characterizing the genomic architecture of a complex disorder requires genome-wide association studies (GWAS) with adequate single nucleotide polymorphism (SNP) density to detect statistical associations between genomic variants and disease expression.
Furthermore, validating a genomic risk map requires rigorous subsequent steps: the identification and fine-mapping of quantitative trait loci (QTL), replication of findings in geographically and genetically independent cohorts, deep sequencing of candidate regions, and functional validation of altered molecular mechanisms. Without systematically fulfilling these phases, any inference of genetic causality lacks scientific validity.
7. Current Evidence in the Feline Species
The primary body of empirical evidence regarding the genetics of feline hip dysplasia relies on the longitudinal study published by Low et al. (2019) in the journal *Scientific Reports*. The study analyzed a 20-year structured database (1993 to 2013) comprising 5,038 Maine Coon cats subjected to standardized ventrodorsal radiographic evaluations according to the health screening protocol of the Swedish organization PawPeds.
Through the application of linear mixed models across a comprehensive pedigree matrix, the authors estimated the heritability coefficient of hip conformation at
0.36
(with a 95% confidence interval between 0.30 and 0.43), confirming a moderate additive genetic influence. The finding of greatest biological significance in this investigation was the identification of a positive genetic correlation of
0.285
between the feline hip dysplasia score and body mass.
This correlation indicates that alleles associated with higher growth potential and body size segregate in conjunction with those predisposing to joint incongruity. From the standpoint of response to selection pressure, the study demonstrated that breeding strategies aimed at reducing dysplasia severity achieved a phenotypic decline across generations, accompanied by a correlated average decrease in body mass of approximately 33 grams per generation in offspring.
It is thus evident that artificial selection focused exclusively on amplifying physical size and weight in Maine Coon cats simultaneously acts as an indirect selection factor for increased severity and prevalence of hip dysplasia. These findings prompted explicit warnings from researchers against breed standard guidelines and breeding practices that celebrate or encourage extreme body size.
8. Absence of Feline Genetic Mapping and the Contrast with the Canine Species
Up to the present year of 2026, no genome-wide association study (GWAS) specific to feline hip dysplasia has been published, and there remains an absolute absence of mapped causal genes or commercial molecular diagnostic panels applicable to this species. This scenario stands in sharp contrast to the progress achieved in canines, where the genetic architecture of joint dysplasia has been extensively investigated by multiple research groups over the past two decades.
In canine literature, numerous variants and functional regions have been identified and associated with the condition. Friedenberg et al. (2011) described a deletion within a regulatory haplotype of the fibrillin-2 (*FBN2*) gene associated with joint laxity and early-onset osteoarthritis in Labrador Retrievers and other breeds. Subsequently, Lavrijsen et al. (2014) demonstrated the involvement of extracellular matrix and articular cartilage structural genes in Dutch Labrador populations, identifying *COL6A3*, *COMP*, *CILP2*, *LAMA2*, *LRR1*, and *GDF15* as primary candidate genes.
Additionally, investigations in British Labrador Retriever cohorts conducted by Sánchez-Molano et al. (2014) revealed that quantitative variations in the Norberg angle are linked to genomic intervals harboring basement membrane collagen genes, specifically *COL4A3* and *COL4A4*. In the German Shepherd dog, Mikkola et al. (2019) identified protective and risk structural variants in regulatory elements of the Noggin (*NOG*) gene, which regulates bone morphogenetic protein (BMP) signaling during osteogenesis and chondrogenesis.
More recently, across-breed whole-genome sequencing analyses performed by Binversie et al. (2022) elucidated the involvement of central inflammatory cytokines, such as interleukin-1 alpha and beta (*IL1A* and *IL1B*), alongside novel structural and signal transduction candidates, including *FBXO25*, *COL27A1*, and *SPRED2*. Furthermore, multi-breed validation studies confirmed 21 loci distributed across 14 canine chromosomes, demonstrating functional pathway enrichment for protein neddylation in the pathogenesis of dysplasia (*BMC Genomics*, 2021; Bartolomé et al., 2015).
It is critical to emphasize that this entire conceptual and genomic framework belongs exclusively to the canine genome (*Canis lupus familiaris*). Despite clinical and radiological similarities in joint degeneration between the two species, the direct transposition of these candidate genes to the feline genome (*Felis catus*) lacks methodological justification and constitutes an unfounded biological assumption in the absence of confirmatory empirical studies in the target species.
9. Environmental Factors: Obesity, Diet and Management
Notwithstanding the contribution of additive heritability, the clinical manifestation and rate of progression of feline hip dysplasia depend intrinsically on environmental variables and nutritional management. Energy-dense diets and unrestricted *ad libitum* feeding represent primary drivers of positive energy balance in strictly indoor domestic cats.
Overweight and feline obesity impose disproportionate static and dynamic mechanical overload on coxofemoral joints, accelerating the loss of articular cartilage integrity and triggering continuous microtrauma. Simultaneously, sedentary behavior and lack of vertical environmental enrichment lead to hypotrophy of the pelvic abductor and extensor musculature, depriving the joint of essential dynamic stabilization provided by functional muscle tone.
It is also important to note that obesity acts as a chronic low-grade inflammatory driver through the systemic release of adipokines and pro-inflammatory mediators, exacerbating synovial degradation. However, these elements constitute strictly modifiable biomechanical and metabolic factors within daily management. Inducing or exacerbating clinical disease in an obese cat must not be conflated with monogenic inheritance and should never be communicated as an underlying genetic driver of the disorder.
10. Perspectives and Pathways for Scientific Advancement
Transitioning from empirical observation to translational feline genomic medicine requires a structured research framework. The initial step necessitates organizing large multicenter feline cohorts characterized by high-precision radiographic phenotyping, utilizing standardized ventrodorsal positioning and rigorous quantitative metrics, such as distraction index and Norberg angle measurements.
Building upon these reference populations, high-throughput molecular genotyping using GWAS platforms customized for the linkage disequilibrium structure of feline breeds is essential. Once phenotype-associated loci are identified, statistical replication in geographically dispersed populations and genetically diverse breeds will be required to distinguish general-effect markers from lineage-specific variants.
Ultimately, consolidating this knowledge base will require *in vitro* and *in silico* functional validation studies designed to elucidate how identified allelic variants modulate the expression of cartilage matrix components or connective tissue regulation. Only through the systematic completion of this scientific roadmap will it become feasible to develop genomic selection panels with genuine predictive validity for clinical practice and ethical breeding programs.
11. Practical Considerations for Clinical Practice and Breeding
Under the current scientific framework, preventive management and prophylactic control of feline hip dysplasia must rely on proven clinical tools. In breeding management, serial radiographic screening of breeding candidates from 12 to 24 months of age remains the sole internationally validated method for health certification and selection, and must be paired with the systematic exclusion of individuals displaying moderate or severe joint incongruity.
In clinical veterinary practice, preventive and therapeutic strategies should strictly focus on body weight control, prescribing balanced nutritional regimens calibrated to individual energy requirements to prevent excess weight gain. Environmental enrichment and physical management promoting controlled physical activity and pelvic muscle development provide essential biomechanical support for joint stability.
Finally, an uncompromising technical and ethical commitment to evidence-based communication is mandatory. Veterinary professionals must educate breeders and owners regarding the multifactorial nature of hip dysplasia, refraining from asserting or endorsing the availability of commercial predictive genetic tests that currently have no existence or validation in biomedical science.
12. Conclusion
An analysis of contemporary scientific literature confirms the absence of genetic mapping or identified causal genes associated with feline hip dysplasia up to 2026. Available genetic evidence in the feline species is limited to quantitative genetic parameters derived from Maine Coon populations, which establish a moderate heritability (
h2=0.36
) and reveal a significant positive genetic correlation with body mass (
rg=0.285
).
Quantitative heritability must not be confused with the identification of specific loci or genes, underscoring that deliberate breeding selection for gigantism and increased body mass directly elevates the risk of osteoarticular disorders. In conclusion, body weight management, environmental optimization, and radiographic screening constitute the primary pillars for managing the condition, reinforcing the urgent need for dedicated feline genomic studies to bridge current scientific gaps.
13. References
- Low M, Eksell P, Högström K, et al. Demography, heritability and genetic correlation of feline hip dysplasia and response to selection in a health screening programme. Sci Rep. 2019;9:17164. DOI: 10.1038/s41598-019-53904-w.
- Friedenberg SG, Zhu L, Zhang Z, et al. Evaluation of a fibrillin 2 gene haplotype associated with hip dysplasia and incipient osteoarthritis in dogs. Am J Vet Res. 2011;72(4):530-540.
- Zhou Z, Sheng X, Zhang Z, et al. Differential genetic regulation of canine hip dysplasia and osteoarthritis. PLoS One. 2010;5(10):e13219.
- Lavrijsen ICM, Heuven HCM, Voorhout G, et al. Genome wide analysis indicates genes for basement membrane and cartilage matrix proteins as candidates for hip dysplasia in Labrador Retrievers. PLoS One. 2014;9(1):e87735.
- Sánchez-Molano E, Woolliams JA, Pong-Wong R, et al. Quantitative trait loci mapping for canine hip dysplasia and its related traits in UK Labrador Retrievers. BMC Genomics. 2014;15:833.
- Mikkola L, Holopainen S, Lappalainen AK, et al. Novel protective and risk loci in hip dysplasia in German Shepherds. PLoS Genet. 2019;15(7):e1008197.
- Binversie EE, Momen M, Rosa GJM, Davis BW, Muir P. Across-breed genetic investigation of canine hip dysplasia, elbow dysplasia, and anterior cruciate ligament rupture using whole-genome sequencing. Front Genet. 2022;13:913354.
- Validation study across breeds of 46 genetic markers in canine hip dysplasia. BMC Genomics. 2021;22:66. DOI: 10.1186/s12864-021-07375-x.
- Bartolomé N, Segarra S, Artieda M, et al. A genetic predictive model for canine hip dysplasia: integration of genome wide association study (GWAS) and candidate gene approaches. PLoS One. 2015;10(4):e0122558.
Claudio Amichetti Júnior
Veterinarian, Specialist in Medicinal
Artigo de Revisão Científica e Atualização Clínica para Médicos Veterinários
Claudio Amichetti Junior
CRMV 75404 · Pós em Nutrição Animal · Pós em Farmacologia · Pós em Cannabis Medicinal
SÃO PAULO
2026
RESUMO
O trato gastrointestinal consolidou-se como o maior órgão imunológico dos mamíferos, albergando mais de setenta por cento das células efetoras do sistema imune e regulando a homeostase global do organismo. Em cães e gatos, rupturas na estabilidade do microbioma intestinal desencadeiam processos disbióticos e aumentam a permeabilidade da barreira epitelial paracelular, facilitando a translocação de subprodutos bacterianos e estabelecendo quadros inflamatórios crônicos de baixo grau. Esta revisão aborda os mecanismos da barreira mucosal e as intrincadas conexões bidirecionais que constituem o eixo microbiota-intestino-cérebro, enfatizando o metabolismo do triptofano e a sinalização neuroendócrina associada a desordens comportamentais. Sob a perspectiva da medicina veterinária integrativa, investigam-se os gatilhos subjacentes às enfermidades sistêmicas, superando a mera supressão de sintomas de órgãos-alvo. São avaliadas as bases científicas para o manejo dietético via provas de eliminação, a modulação por substratos fermentáveis e o emprego racional de prebióticos, probióticos hospedeiro-específicos e pós-bióticos como moduladores imunológicos. Conclui-se que o restabelecimento individualizado e gradual da homeostase entérica representa uma intervenção clínica basilar no controle das enteropatias crônicas e comorbidades imuno-mediadas em animais de companhia.
Palavras-chave: microbiota intestinal; disbiose; permeabilidade intestinal; probióticos; prebióticos; pós-bióticos; eixo intestino-cérebro; medicina veterinária integrativa; enteropatia crônica.
1. Introdução
A compreensão tradicional do trato gastrointestinal restrita às funções digestivas e absortivas cedeu lugar nas últimas décadas a uma visão que o reconhece como a maior e mais complexa interface imunológica do organismo animal. Em caninos e felinos, a mucosa intestinal abriga o tecido linfoide associado ao intestino (GALT, do inglês gut-associated lymphoid tissue), estruturado funcionalmente em elementos indutores, como as placas de Peyer e folículos linfoides isolados, e elementos efetores, representados por linfócitos intraepiteliais e plasmócitos da lâmina própria. Estima-se que mais de 70% das células imunocompetentes de todo o organismo residam no compartimento gastrointestinal, tornando o intestino o principal sítio regulador da tolerância imunológica periférica e da resposta contra patógenos luminais.
Na rotina clínica de pequenos animais, a abordagem farmacológica convencional frequentemente se concentra na atenuação de sintomas agudos ou na imunossupressão voltada a órgãos-alvo isolados, como manifestações dermatológicas, queixas respiratórias ou disfunções músculo-esqueléticas de caráter crônico. Não raro, essa conduta terapêutica suprime os sinais clínicos de forma temporária, sem intervir nas variáveis causais que perpetuam os estados inflamatórios basais. Em contrapartida, a medicina veterinária integrativa adota um paradigma sistêmico, fundamentado no entendimento de que a desregulação na homeostase da barreira entérica e nos sinais metabólicos da microbiota pode atuar como o epicentro patogenético de enfermidades distantes do tubo gastrointestinal.
O enquadramento integrativo exige rigor na interpretação fisiopatológica dos processos inflamatórios. Este artigo propõe aos médicos veterinários uma análise técnica e aprofundada dos mecanismos que regem a interação entre o microambiente intestinal, os mediadores inflamatórios sistêmicos e as redes de comunicação neural e neuroendócrina, fornecendo substrato científico para intervenções diagnósticas e nutricionais direcionadas à etiologia primária das desordens imuno-mediadas e comportamentais em cães e gatos.
2. A Barreira Intestinal e a Microbiota
2.1 Anatomia e função do tubo intestinal e de sua barreira
A barreira intestinal é uma estrutura multicomponente altamente especializada, desenhada para cumprir uma dupla função antagônica: garantir a assimilação eficiente de água, eletrólitos e macronutrientes, enquanto restringe rigorosamente a passagem de antígenos alimentares intactos, microrganismos viáveis e endotoxinas luminais. Anatomopatologicamente, essa barreira se organiza em três níveis interdependentes: o componente pré-epitelial, o componente epitelial e o componente pós-epitelial.
O nível pré-epitelial é composto pelo muco secretado pelas células caliciformes, rico na glicoproteína mucina-2 (MUC2), que forma uma matriz hidrogel contínua recobrindo o epitélio. Esta camada atua como anteparo físico e retém peptídeos antimicrobianos (como as defensinas sintetizadas pelas células de Paneth ou seus análogos entéricos) e imunoglobulina A secretora (sIgA), neutralizando microrganismos patogênicos antes de sua adesão à superfície celular. A camada epitelial, por sua vez, é formada por uma monocamada de enterócitos contíguos unidos por complexos juncionais apicais. O estrato pós-epitelial compreende a lâmina própria, densamente povoada por células apresentadoras de antígenos (dendríticas e macrófagos), linfócitos T e B, vasos sanguíneos e linfáticos que integram o GALT.
2.2 A microbiota comensal: complexidade funcional além de classificações taxonômicas
A luz do trato digestivo abriga uma comunidade microbiana dinâmica, composta por bactérias, fungos, protozoários e vírus que coevoluíram em estreita relação de simbiose com o hospedeiro canino e felino. Em condições de eubiose, essa população atua na digestão de carboidratos complexos indigeríveis, na síntese de micronutrientes essenciais (como certas vitaminas do complexo B e vitamina K) e na exclusão competitiva de linhagens patogênicas por competição por sítios de ligação e substratos, bem como pela produção de bacteriocinas e ácidos graxos de cadeia curta (AGCC).
Tradicionalmente, a literatura utilizava a relação entre os filos bacterianos Firmicutes e Bacteroidetes (razão F/B) como um indicador linear de saúde metabólica e intestinal. A moderna metagenômica funcional demonstra, contudo, que essa categorização em nível de filo representa uma simplificação excessiva e por vezes imprecisa da biologia microbiana entérica. Enquanto diversos representantes do filo Bacteroidetes exercem papéis fermentadores essenciais para a homeostase imune, linhagens do filo Firmicutes compreendem tanto produtores fundamentais de butirato (como membros das famílias Lachnospiraceae e Ruminococcaceae) quanto clados potencialmente patogênicos (como certas espécies de Clostridium). Assim, o indicador mais fidedigno de estabilidade e resiliência fisiológica reside na diversidade filogenética e na redundância metabólica global do ecossistema microbiano, e não em razões taxonômicas simplificadas (SCHMITZ; SUCHODOLSKI, 2024).
2.3 Disbiose: definição, causas e consequências clínicas
Define-se disbiose como qualquer alteração qualitativa, quantitativa ou funcional na composição da microbiota nativa que comprometa o equilíbrio fisiológico com o organismo hospedeiro. Esse fenômeno cursa frequentemente com o declínio na diversidade de espécies comensais benéficas, a proliferação excessiva de microrganismos facultativos patogênicos (como certas Enterobacteriaceae) e a perda de vias metabólicas cruciais à homeostase, a exemplo da conversão de ácidos biliares primários em secundários.
As causas primárias de disbiose em cães e gatos abrangem a exposição inadequada a agentes antimicrobianos de amplo espectro — capazes de suprimir clados essenciais por períodos prolongados —, o estresse psicossomático ou ambiental agudo e crônico, quadros infecciosos gastrointestinais e, de maneira proeminente, o consumo contínuo de dietas inadequadas, hiperprocessadas ou carentes de substratos fibrosos apropriados à espécie. As repercussões locais imediatas incluem a redução na síntese de metabólitos trofomucosa, colapso na estratificação da camada de muco protetor e indução de estresse oxidativo na superfície dos enterócitos, criando o cenário para a falência da barreira mecânica.
3. Permeabilidade Intestinal ("Intestino Permeável") e Inflamação Sistêmica
3.1 Junções oclusivas e a via paracelular
O transporte de substâncias a partir do lúmen intestinal para a circulação sistêmica opera por duas vias primárias: a via transcelular (através do citoplasma do enterócito, regulada por transportadores específicos) e a via paracelular (através do espaço intercelular entre enterócitos vizinhos). A regulação do tráfego paracelular é realizada pelo complexo juncional apical, no qual as junções oclusivas (tight junctions) atuam como o componente determinante de seletividade e vedação.
As junções oclusivas são formadas por uma rede de proteínas transmembrana — incluindo claudinas formadoras de poros ou de vedação, ocludina e moléculas de adesão juncional (JAMs) — que se ancoram ao citoesqueleto de actina intracelular através de proteínas de andaime periféricas, primordialmente a zonulina oclusiva-1 (ZO-1). Em condições fisiológicas normais, este complexo macromolecular modula a sua porosidade dinamicamente, permitindo apenas a difusão passiva de água e íons menores, bloqueando a penetração de antígenos macromoleculares de massa superior a aproximadamente 600 daltons.
3.2 Translocação luminal e resposta imune endotóxica
Quando o microambiente sofre alterações disbióticas, ocorrem cascatas de degradação da integridade paracelular. A proliferação descontrolada de bactérias Gram-negativas aliada à carência de AGCC e ao estresse oxidativo estimula a fosforilação aberrante e a internalização de proteínas ocludinas e ZO-1, desmantelando a arquitetura das junções oclusivas. Estabelece-se, assim, a condição patológica descrita na literatura como aumento da permeabilidade intestinal (frequentemente referida no jargão clínico como síndrome do intestino permeável ou leaky gut).
Neste estado de desarranjo estrutural, antígenos de alto peso molecular, peptídeos alimentares parcialmente digeridos e padrões moleculares associados a patógenos (PAMPs) transpõem a barreira epitelial de forma não controlada, alcançando a lâmina própria e o leito vascular subjacente. Destaca-se nesse processo a translocação de lipopolissacarídeos (LPS), componentes glicolipídicos da membrana externa de bactérias Gram-negativas com potente ação pirógena e inflamatória. Uma vez na lâmina própria, o LPS liga-se aos receptores de reconhecimento de padrões, especificamente o receptor do tipo Toll 4 (TLR4) presente em macrófagos e células dendríticas, ativando a via de sinalização do fator nuclear kappa B (NF-κB) e deflagrando uma liberação sustentada de citocinas pró-inflamatórias, tais como o fator de necrose tumoral alfa (TNF-α), interleucina-1 beta (IL-1β) e interleucina-6 (IL-6).
3.3 A ligação com a inflamação crônica de baixo grau e condições imuno-mediadas
O influxo contínuo e persistente de PAMPs na circulação portal e venosa sistêmica sobrecarrega a capacidade de depuração das células de Kupffer hepáticas, instituindo uma condição de endotoxemia metabólica de baixo grau. Esse processo inflamatório subclínico e crônico não desencadeia necessariamente febre ou choque endotóxico agudo, mas altera de forma silenciosa e prolongada o tônus inflamatório sistêmico em todo o organismo animal.
No âmbito da medicina veterinária contemporânea, formula-se a hipótese biológica de que a exposição crônica do sistema imune sistêmico a antígenos que translocam a barreira intestinal atua como um potente impulsionador ou gatilho ambiental para manifestações inflamatórias e autoimunes extra-intestinais. Deve-se ressaltar, sob rigor científico, que tal correlação permanece descrita na literatura como uma associação mecanística e hipótese fisiopatológica consistente, sem que se tenha estabelecido, até o presente estágio científico, uma relação de causalidade universal e direta para todas as afecções imuno-mediadas. Entretanto, evidências clínicas observam que animais com manifestações de atopia cutânea, artrites inflamatórias imunomediadas e enteropatias crônicas apresentam graus mensuráveis de alteração na permeabilidade epitelial e na arquitetura do microbioma entérico.
4. O Eixo Microbiota–Intestino–Cérebro
4.1 Comunicação bidirecional e vias integradoras
O eixo microbiota-intestino-cérebro consiste em uma rede de sinalização bidirecional que integra os sistemas nervoso central (SNC), nervoso entérico (SNE), imunológico e endócrino. O sistema nervoso autônomo, com ênfase primordial nas vias aferentes e eferentes do nervo vago, atua como via de conexão rápida entre as respostas luminais e os núcleos cerebrais subcorticais. Informações neuroquímicas originadas no lúmen intestinal alcançam as regiões límbicas do encéfalo, enquanto o estresse cortical modula, via eixo hipotálamo-hipófise-adrenal (HHA), a motilidade gastrintestinal, a produção de muco e a imunoglobulina secretora local (KHANAMANI FALAHATIPOUR; SOLTANI, 2026).
Paralelamente, a sinalização é veiculada por vias endócrinas e metabólicas mediadas por produtos bacterianos solúveis, como os AGCC e metabólitos derivados de aminoácidos, que interagem diretamente com o SNE e atingem sítios encefálicos capazes de modular a neurotransmissão e a neurogênese.
4.2 Metabolismo do triptofano, serotonina e biomarcadores neuroendócrinos
O aminoácido essencial l-triptofano atua como precursor em vias metabólicas de alta relevância biológica: a via da serotonina e a via da quinurenina. Estima-se que mais de 90% da serotonina (5-hidroxitriptamina, 5-HT) total do corpo de mamíferos seja sintetizada na periferia, especificamente pelas células enterocromafins intestinais, através da enzima triptofano hidroxilase-1. Essa síntese periférica é diretamente dependente e estimulada pela presença de populações microbianas específicas e seus metabólitos luminais. A serotonina entérica regula a motilidade motora, o tônus vasomotor visceral, as respostas secretoras e atua como precursora da biossíntese da melatonina gastrointestinal, fundamental para a proteção celular e sincronização de ritmos circadianos.
Em situações de inflamação e disbiose intestinal, citocinas como o IFN-γ e TNF-α desviam o metabolismo do triptofano para a via da quinurenina, esgotando o substrato disponível para a via serotoninérgica e gerando metabólitos pró-inflamatórios e potencialmente neurotóxicos. O ácido 5-hidroxi-indolacético (5-HIAA) representa o metabólito catabólico final primário da serotonina, excretado via renal. O uso do 5-HIAA urinário foi consolidado na pesquisa veterinária contemporânea como um biomarcador fidedigno e não invasivo das alterações funcionais no metabolismo do triptofano. Estudos clínicos em cães demonstraram que variações na suplementação dietética de triptofano e desafios orais específicos geram alterações na excreção urinária de 5-HIAA, confirmando a responsividade dinâmica dessa via neuroentérica a intervenções nutricionais dirigidas (CHEUNG et al., 2025).
4.3 Repercussões clínicas em comportamento, ansiedade e cognição
A integridade da comunicação ao longo do eixo microbiota-intestino-cérebro impacta a clínica comportamental de pequenos animais. Populações caninas e felinas diagnosticadas com desordens comportamentais crônicas — como transtornos de ansiedade generalizada, hiperreatividade, fobias sonoras, comportamentos compulsivos e agressividade idiopática — frequentemente exibem quadros de disbiose subjacente ou enteropatia crônica subclínica quando investigadas sob uma ótica funcional (DEL TRESTE et al., 2026).
A inflamação sistêmica de baixo grau e a liberação desbalanceada de metabólitos neuroativos alteram a homeostase da barreira hematoencefálica, estimulando a ativação microglial e processos de neuroinflamação de intensidade branda. Em animais idosos, essas alterações microbianas e inflamatórias intestinais associam-se a declínios cognitivos acelerados, análogos à síndrome da disfunção cognitiva canina. O reconhecimento dessas interações fornece aos médicos veterinários subsídios para intervir no trato digestivo como estratégia coadjuvante no manejo de queixas comportamentais refratárias.
5. Manejo Dietético: A Prova de Eliminação como Ferramenta Clínica
5.1 Racionalidade das dietas de eliminação na enteropatia crônica
A abordagem terapêutica das enteropatias crônicas (EC) caninas e felinas exige um escalonamento diagnóstico fundamentado nas respostas clínicas (RUDINSKY; ROWE; PARKER, 2018; DIET TRIALS FOR CHRONIC ENTEROPATHY, 2022). Classificam-se os pacientes em portadores de enteropatia responsiva à dieta (ERD), enteropatia responsiva a antibióticos ou imunossupressores. Dentre essas, a ERD é a condição mais prevalente, abrangendo até sessenta a setenta por cento dos casos crônicos encaminhados na rotina médica. A realização criteriosa de uma prova dietética de eliminação constitui, por conseguinte, a intervenção diagnóstica e terapêutica prioritária, devendo invariavelmente preceder o emprego de corticosteroides ou imunomoduladores sintéticos.
A prova de eliminação fundamenta-se na oferta exclusiva de uma fonte alimentar hipoantigênica durante um intervalo contínuo de seis a oito semanas. Duas opções primárias encontram respaldo na literatura:
Dietas com Proteína Hidrolisada: Utilizam processos enzimáticos para clivar cadeias polipeptídicas complexas em pequenos peptídeos e aminoácidos livres de baixo peso molecular (geralmente abaixo de 10 a 12 quilodaltons). Essas frações moleculares reduzidas são incapazes de realizar a ligação cruzada de anticorpos IgE fixados à membrana de mastócitos e basófilos ou de estimular linfócitos T na mucosa entérica, neutralizando o reconhecimento imunológico antigênico. Demonstra-se na literatura clínica que mesmo animais com falhas prévias em testes de eliminação podem responder favoravelmente a formulações extensamente hidrolisadas (AN EXTENSIVELY HYDROLYSED..., 2025).
Dietas com Proteína Nova e Ingredientes Limitados: Fundamentam-se na seleção criteriosa de uma única fonte protéica e uma única fonte de carboidratos às quais o animal jamais tenha sido exposto historicamente. A eficácia desse protocolo demanda anamnese dietética pregressa exaustiva a fim de afastar o risco de sensibilização antigênica prévia ou contaminações cruzadas.
5.2 Sensibilidades individuais: glúten e laticínios
No cenário clínico de cães e gatos, o papel de antígenos alimentares como as prolaminas do glúten e as frações glicídicas e protéicas de laticínios (como lactose e caseína) requer discriminação técnica cautelosa. Salvo afecções hereditárias específicas pontualmente identificadas em linhagens isoladas (como a enteropatia associada ao glúten documentada em cães da raça Setter Irlandês), a intolerância ao glúten ou frações lácteas não se manifesta como uma patologia universal da espécie canina ou felina. Deve ser compreendida na prática médica integrativa como uma reatividade ou hipersensibilidade alimentar individualizada.
A exposição continuada a proteínas antigênicas incompatíveis com um determinado indivíduo cuja barreira mucosal já se encontre previamente lesionada amplifica o recrutamento leucocitário e a síntese local de imunoglobulinas, exacerbando o ciclo vicioso de perda de integridade paracelular. A remoção controlada dessas fontes antigênicas durante as provas alimentares apresenta respaldo empírico individual, sem que se deva incorrer na generalização de que tais compostos representem toxinas universais para todos os carnívoros domésticos.
5.3 Manejo de substratos fermentáveis e estufamento
Pacientes afetados por disbiose e alterações de motilidade exibem frequentemente intolerância digestiva à sobrecarga de substratos altamente fermentáveis no cólon. A ingestão de amidos resistentes em excesso, leguminosas ricas em galactooligossacarídeos e vegetais crucíferos com elevados teores de enxofre pode deflagrar fermentação bacteriana acelerada e patológica. Este processo se manifesta clinicamente por meteorismo, borborigmos intensos, dor em cólica abdominal, distensão tecidual ("estufamento") e flatulência fétida.
Nestes pacientes sensíveis, a fermentação excessiva produz elevadas concentrações gasosas de hidrogênio, metano e sulfeto de hidrogênio (
$$H_2S$$
). O sulfeto de hidrogênio, em concentrações aumentadas, exerce ação inibitória direta sobre a beta-oxidação de butirato pelos colonócitos, degradando ainda mais a competência funcional da barreira intestinal. A modulação terapêutica temporária requer a restrição cautelosa desses componentes de alta fermentabilidade até que se restabeleça a eubiose e a integridade de absorção funcional.
5.4 A importância de dietas espécie-adequadas e o impacto de ultraprocessados
A base da nutrição clínica integrativa orienta-se pela compatibilidade metabólica entre o perfil do alimento fornecido e as exigências fisiológicas da espécie canina (carnívoro facultativo/onívoro adaptável) e felina (carnívoro estrito). Formulações industriais que contenham excesso de amidos gelatinizados, aditivos conservantes artificiais, corantes e que tenham passado por múltiplos ciclos térmicos severos podem favorecer a formação de produtos finais de glicação avançada (AGEs). Os AGEs exercem ação pró-oxidante e ligam-se aos receptores RAGE nas células endoteliais e intestinais, induzindo respostas inflamatórias crônicas. O planejamento dietético balanceado, formulado com matérias-primas de alta digestibilidade biológica e processamento controlado, constitui a pedra basilar para reduzir a carga de antígenos luminais e restaurar a arquitetura ecológica do microbioma.
6. Probióticos, Prebióticos e Pós-bióticos
6.1 Definições conceituais e mecanismos moleculares
A modulação biológica da microbiota fundamenta-se em três pilares fundamentais de intervenção:
Probióticos: Microrganismos vivos que, quando administrados em quantidades adequadas, conferem benefícios à saúde do hospedeiro animal. Atuam pela ocupação competitiva de nichos ecológicos, pela secreção de peptídeos antibacterianos e pela sinalização aos receptores de reconhecimento celular (WANG et al., 2026).
Prebióticos: Substratos seletivamente utilizados por microrganismos do hospedeiro conferindo benefícios fisiológicos documentados. Compreendem principalmente fibras solúveis não digeríveis que chegam ao cólon intactas para servirem de alimento à microbiota comensal.
Pós-bióticos: Preparações compostas por microrganismos inanimados e/ou seus componentes e metabólitos solúveis (como fragmentos de parede celular, ácido teicoico, exopolissacarídeos e AGCC) que conferem benefícios sistêmicos ao hospedeiro, dispensando a necessidade de viabilidade celular dos microrganismos (ABBAS et al., 2026).
Os mecanismos moleculares operam de modo sinérgico. A fermentação bacteriana de prebióticos gera AGCC — predominantemente acetato, propionato e butirato. O butirato atua como a principal fonte de energia metabólica para os colonócitos, induzindo diretamente a expressão de mucina-2 (MUC2) e o upregulation transcricional das proteínas de oclusão (claudinas e ocludina). Adicionalmente, componentes microbianos interagem com os receptores do tipo Toll (TLRs), receptores de ligação de oligomerização por nucleotídeos (NLRs) e receptores acoplados à proteína G (GPR41, GPR43, GPR109A), inibindo a via do NF-κB, estimulando a liberação da citocina imunorreguladora interleucina-10 (IL-10) por linfócitos T reguladores (Tregs) e suprimindo citocinas pró-inflamatórias como o TNF-α.
6.2 Especificidade de cepa e de hospedeiro em pequenos animais
Um dos equívocos na rotina clínica veterinária consiste na transposição empírica de formulações probióticas genéricas de uso humano para cães e gatos, sem considerar os critérios de especificidade de hospedeiro e identidade clonal. A fisiologia gastrointestinal de carnívoros domésticos difere expressivamente da humana em termos de pH gástrico, comprimento relativo do tubo digestivo, concentração de ácidos biliares e composição nativa da comunidade comensal.
Evidências biomédicas atestam que as ações benéficas dos probióticos são estritamente cepa-específicas (WANG et al., 2026). Bactérias pertencentes a uma mesma espécie botânica/zoológica manifestam perfis biológicos distintos: enquanto uma cepa isolada pode conferir indução imunomoduladora anti-inflamatória, outra linhagem homóloga pode ser inócua ou agir de forma antagônica. Prioriza-se na prática moderna o emprego de probióticos hospedeiro-específicos, devidamente isolados do trato digestivo de caninos e felinos saudáveis, ou linhagens amplamente validadas em ensaios controlados de farmacocinética de colonização e tolerância ácida nas espécies de destino.
6.3 Prebióticos e pós-bióticos como terapêutica de nova geração
Dentre os prebióticos consagrados para cães e gatos, destacam-se a inulina, a raiz de chicória desidratada e os fruto-oligossacarídeos (FOS), ao lado dos mananoligossacarídeos (MOS). Tais componentes promovem a expansão seletiva de gêneros sacarolíticos benéficos e estimulam a síntese de AGCC protetores. Contudo, em pacientes que exibem grave desequilíbrio disbiótico, o uso indiscriminado de doses elevadas de prebióticos pode desencadear fermentação desregulada, dor abdominal e diarreia osmótica, exigindo introdução gradual.
Neste contexto, os pós-bióticos consolidam-se como intervenções bioterapêuticas de nova geração voltadas ao eixo intestino-imunidade-metabolismo (ABBAS et al., 2026). Por prescindirem da integridade celular viável, os pós-bióticos eliminam os riscos inerentes à translocação bacteriana viável em pacientes criticamente enfermos, com quebra total de integridade epitelial ou imunossuprimidos. Apresentam estabilidade farmacotécnica superior, tolerando variações de temperatura sem perda de eficácia biológica, além de interagirem de modo imediato com os receptores imunes da mucosa.
6.4 Variabilidade e ressalvas clínicas na bioterapia
A despeito dos benefícios teóricos, a prescrição clínica de moduladores da microbiota exige cautela científica. O mercado de suplementos veterinários padece frequentemente de variabilidade analítica na contagem de unidades formadoras de colônias (UFC), divergências de pureza de cepa em relação aos rótulos e falhas de sobrevida microbiana na passagem pela barreira ácida gástrica até a chegada ao íleo e cólon (SCHMITZ; SUCHODOLSKI, 2024).
A recomendação clínica ética e integrativa afasta modismos comerciais e exige o respaldo de ensaios clínicos controlados por placebo, com determinação analítica de estabilidade e de biodisponibilidade. O médico veterinário deve compreender que os probióticos convencionais operam primariamente como moduladores transitórios durante o curso de sua administração, não colonizando o intestino de forma permanente, o que ratifica a importância primordial de manejar o nicho dietético ecológico subjacente.
7. Abordagem Clínica Integrativa
7.1 Paradigma centrado na causa fundamental
O modelo da medicina integrativa contrapõe-se à simples supressão sintomática paliativa de enteropatias ou de desordens inflamatórias periféricas secundárias. Embora o controle de vômitos incoercíveis, perdas hídricas críticas e dores viscerais exija intervenções farmacológicas pontuais de suporte, a conduta definitiva exige a erradicação dos fatores perpetuadores da quebra de barreira e da resposta endotóxica de baixo grau. O objetivo clínico reside em restituir a capacidade de autorregulação fisiológica do organismo animal.
7.2 Diagnóstico laboratorial funcional e biomarcadores
A abordagem diagnóstica transcende o tradicional exame parasitológico fecal por flutuação e sedimentação. A propedêutica contemporânea engloba avaliações laboratoriais avançadas:
Coprologia Funcional e Parasitologia Direta: Investigação abrangente de resíduos alimentares indigeridos, presença de muco fecal, amilometria, avaliação de pH fecal e rastreio molecular para parasitas intestinais crônicos (incluindo Giardia duodenalis e Tritrichomonas foetus).
Biomarcadores de Inflamação Mucosa: Dosagem de proteínas marcadoras de migração neutrofílica no lúmen intestinal, a exemplo da calprotectina fecal canina e da proteína S100A12, úteis para diferenciar enteropatias funcionais de lesões inflamatórias ativas da mucosa.
Avaliação da Microbiota e Disbiose: Emprego do Índice de Disbiose Fecal (Dysbiosis Index), ensaio baseado em PCR quantitativo (qPCR) desenhado para avaliar as proporções numéricas de grupos bacterianos comensais chave (como Faecalibacterium, Turicibacter, Blautia, Fusobacterium e Clostridium hiranonis), gerando um escore numérico indicativo da severidade do desvio ecológico do microbioma.
Parâmetros Sistêmicos do Eixo Intestinal: Monitoramento sérico dos níveis de cobalamina (vitamina B12) e folato para averiguar a capacidade de absorção ileal e duodenal, além da quantificação de metabólitos séricos ou urinários correlatos ao metabolismo funcional de triptofano, como o 5-HIAA.
7.3 Protocolo escalonado e integrado
A restauração da homeostase entérica deve estruturar-se em etapas sequenciais e sinérgicas, detalhadas no protocolo abaixo:
Etapa 1 — Repouso e Remoção de Gatilhos: Instituição imediata de intervenção dietética com prova de eliminação restrita (dieta extensamente hidrolisada ou monoproteica nova, espécie-adequada), eliminando aditivos sintéticos, excessos de amidos de alto índice glicêmico e alérgenos potenciais.
Etapa 2 — Reinoculação e Modulação Metabólica: Introdução guiada de probióticos específicos validados e pós-bióticos para atenuar o estresse da barreira, seguida da adição paulatina de prebióticos toleráveis para restabelecer a síntese de ácidos graxos de cadeia curta sem agravar meteorismo.
Etapa 3 — Equilíbrio Ambiental e Estilo de Vida: Redução dos estressores comportamentais do paciente mediante enriquecimento ambiental, estruturação de rotinas previsíveis de exercício físico adaptado, qualidade de sono e manejo do ambiente sonoro e social doméstico, diminuindo o influxo adrenérgico e de cortisol via eixo cérebro-intestino.
Etapa 4 — Monitoramento e Desmame Gradual: Acompanhamento quinzenal ou mensal via escore fecal padronizado (sistema Bristol ou Purina fecal scoring system), pesagem corporal contínua, repetição de biomarcadores selecionados e reintrodução provocativa individual de novos ingredientes quando indicado.
7.4 Individualização terapêutica e tempo de resposta biológica
O médico veterinário deve alinhar com os tutores o princípio fundamental de que o tratamento da disbiose intestinal crônica e a recomposição estrutural da barreira epitelial não dispõem de soluções farmacológicas instantâneas ou curas mágicas de curto prazo. A reconstituição de um ecossistema mucosal desorganizado é um processo biológico adaptativo intrinsecamente gradual, demandando usualmente semanas ou meses de consistência dietética irrestrita.
Cada animal representa uma identidade bioquímica e imunológica singular. Respostas clínicas favoráveis observadas com um determinado protocolo em um cão ou gato podem revelar-se ineficazes em outro indivíduo com manifestação clínica superficialmente análoga. Essa variabilidade individualizada reforça a necessidade de contínuo ajuste terapêutico adaptado às respostas metabólicas particulares de cada paciente.
8. Conclusão
O avanço no conhecimento translacional e metagenômico consolidou a saúde intestinal como o pilar mais expressivo da homeostase fisiológica em medicina veterinária de pequenos animais. A integridade da barreira intestinal e o equilíbrio funcional de sua microbiota comensal atuam na modulação imunitária global e na regulação neuroendócrina sistêmica. A falha na vedação das junções oclusivas e a instalação da endotoxemia metabólica crônica sustentam processos inflamatórios de baixo grau que se associam, com relevância clínica, a manifestações alérgicas, imuno-mediadas e neurocomportamentais.
A adoção de uma abordagem integrativa e orientada pelas evidências científicas capacita o médico veterinário a transcender a terapêutica de simples supressão dos sintomas em órgãos periféricos, intervindo nas causas etiológicas fundamentais das afecções crônicas. O direcionamento terapêutico apoiado em provas alimentares rigorosas, na modulação biológica racional por probióticos específicos, prebióticos e pós-bióticos, associado ao controle do estresse no eixo cérebro-intestino, restaura a capacidade auto-regulatória do animal. O intestino consolida-se, portanto, não apenas como órgão digestivo, mas como o alvo terapêutico basilar e inescapável para a promoção da longevidade e da saúde integral de cães e gatos.
9. Referências
ABBAS, A.; WEISKIRCHEN, R.; BILAL, M. et al. Postbiotics as Next Generation Biotherapeutics Targeting the Gut–Immune–Metabolic Axis: An Integrative Review. Pharmaceuticals, v. 19, n. 8, p. 1184, 2026. DOI: 10.3390/ph19081184.
AN EXTENSIVELY hydrolysed protein-based extruded diet in the treatment of dogs with chronic enteropathy and at least one previous diet-trial failure: a pilot uncontrolled open-label study. BMC Veterinary Research, 2025. DOI: 10.1186/s12917-025-04528-y.
CHEUNG, C. Y. Y.; RIGLING, J.; STANG, B. V.; RUAUX, C. G. The effect of dietary tryptophan supplementation, and an oral tryptophan challenge, on urinary excretion of 5-hydroxyindoleacetic acid in domestic dogs. Frontiers in Veterinary Science, 2025. DOI: 10.3389/fvets.2025.1634940.
DEL TRESTE, A.; SACCHETTINO, L.; COSTANZA, D. et al. Intestinal Dysbiosis Relating to Gut–Brain Axis and Behavior in Dogs: A Systematic Review with Text Mining Approach. Animals, v. 16, n. 6, p. 986, 2026. DOI: 10.3390/ani16060986.
DIET Trials for Chronic Enteropathy. Today's Veterinary Practice, 2022.
KHANAMANI FALAHATIPOUR, S.; SOLTANI, M. Targeting the Gut–Brain Axis: Pharmacological Modulation of the Microbiome for Neurological and Behavioural Disorders in Companion Animals. Veterinary Medicine and Science, 2026. DOI: 10.1002/vms3.71105.
RUDINSKY, A. J.; ROWE, J. C.; PARKER, V. J. Nutritional management of chronic enteropathies in dogs and cats. Journal of the American Veterinary Medical Association, v. 253, n. 5, p. 570-578, 2018. DOI: 10.2460/javma.253.5.570.
SCHMITZ, S.; SUCHODOLSKI, J. Understanding the canine intestinal microbiota and its modification by pro-, pre- and synbiotics – what is the evidence? Journal of Small Animal Practice, 2024.
WANG, Z.; WANG, W.; ZHANG, P.; LUO, J.; ZHANG, Y.; YANG, Q. From conventional probiotics to precision nutrition: host-specific probiotics in canine and feline functional foods. Frontiers in Veterinary Science, 2026. DOI: 10.3389/fvets.2026.1881134.
Claudio Amichetti Junior
CRMV 75404
Pós em Nutrição Animal · Pós em Farmacologia · Pós em Cannabis Medicinal
Documento técnico-científico elaborado em 29 de setembro de 2026.
Ver esse post no Instagram
Ver esse post no Instagram
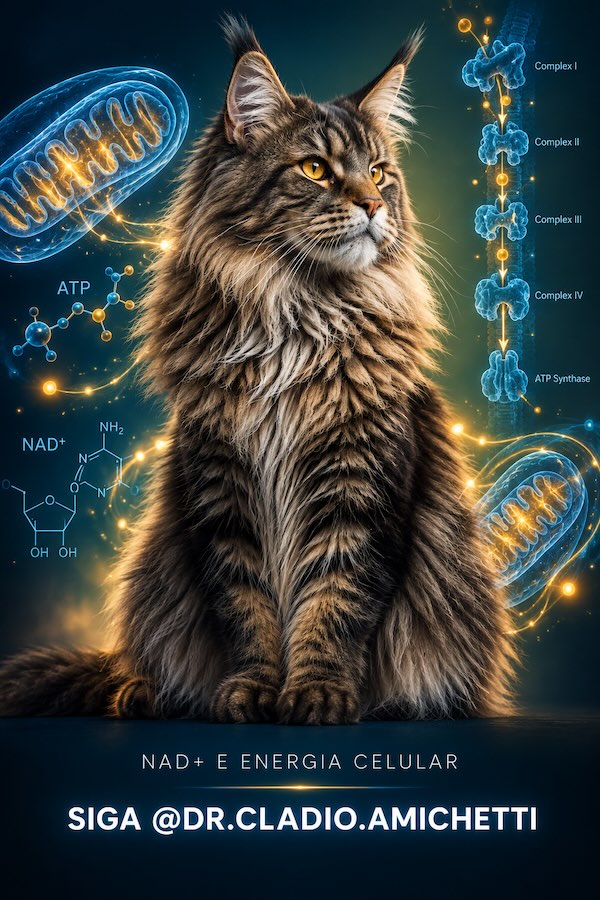
NAD⁺ e a cadeia transportadora de elétrons: fundamentos bioquímicos, declínio relacionado à idade e perspectivas na medicina veterinária
NAD⁺ and the electron transport chain: biochemical foundations, age-related decline and perspectives in veterinary medicine
Resumo
A nicotinamida adenina dinucleotídeo (NAD⁺) é cofator central do metabolismo energético e substrato de enzimas envolvidas em reparo do DNA, resposta inflamatória e sobrevivência celular. Sua disponibilidade declina com a idade por aumento do consumo enzimático e redução das vias de ressíntese, com impacto direto sobre a produção mitocondrial de ATP. Este artigo revisa os fundamentos físico-químicos do elétron, o funcionamento da cadeia transportadora de elétrons, a biologia do NAD⁺ e as evidências — ainda incipientes — de sua aplicação na medicina veterinária, especialmente em cães e gatos geriátricos. A principal conclusão é que a elevação farmacológica do NAD⁺ é segura e factível, mas a tradução em desfechos clínicos permanece não comprovada e exige individualização diagnóstica.
Palavras-chave: NAD⁺. Cadeia transportadora de elétrons. Mitocôndria. ATP. Longevidade. Nutrição animal. Medicina veterinária integrativa.
1. Introdução
A redução da atividade física, o declínio cognitivo, a perda de massa muscular e a fadiga persistente figuram entre as manifestações mais precoces do envelhecimento — tanto em seres humanos quanto em animais de companhia. Em medicina veterinária, essas alterações são frequentemente atribuídas de forma genérica ao "envelhecimento normal" do animal, o que retarda a investigação de mecanismos moleculares que já se encontram descritos e mensuráveis.
Entre esses mecanismos, destaca-se a queda da disponibilidade celular de NAD⁺, cofator essencial da respiração mitocondrial e substrato de enzimas que regulam reparo de DNA (PARPs), silenciamento gênico (sirtuínas) e sinalização inflamatória. O declínio de NAD⁺ foi associado, em tecido humano, à redução da capacidade de produção de energia e ao aumento do estresse oxidativo (MASSudi et al., 2012). Em medicina veterinária, estudos recentes em modelo canino de distrofia muscular de Duchenne demonstraram queda do conteúdo de NAD⁺ no músculo estriado e alteração de enzimas dependentes do cofator (CARDOSO et al., 2023), enquanto ensaios clínicos em cães seniores apontam efeitos sobre a função cognitiva (SIMON et al., 2024).
Este trabalho tem como objetivo (i) apresentar o elétron como unidade fundamental do fluxo energético biológico, (ii) descrever a cadeia transportadora de elétrons e o papel do NAD⁺ nesse processo, (iii) revisar criticamente as evidências sobre a suplementação de precursores e (iv) discutir a aplicabilidade e os limites desses achados na clínica de animais de companhia.
2. O elétron: a partícula que move a vida
O elétron (símbolo
e−
; também
β−
quando originado de decaimento radioativo beta) é uma partícula elementar — não é constituído por unidades menores. Suas propriedades fundamentais estão bem estabelecidas:
- Carga elétrica:
−1,602×10−19
C, a carga negativa elementar; o próton possui o mesmo valor, com sinal positivo.
- Massa:
9,11×10⁻³¹
kg — aproximadamente 1/1836 da massa do próton. A quase totalidade da massa atômica concentra-se no núcleo.
- Spin: ½ (férmion).
- Família: lépton de primeira geração, ao lado do múon e do tau — dos quais é o único estável.
- Descoberta: J. J. Thomson, em 1897, a partir de experimentos com tubos de raios catódicos (THOMSON, 1897).
No átomo, o elétron não orbita o núcleo como um corpo em trajetória definida: existe como nuvem de probabilidade. É justamente o seu rearranjo que sustenta toda a química — ligações químicas, eletricidade e luz são, em essência, elétrons mudando de posição.
Do ponto de vista biológico, o organismo não produz nem consome elétrons como consome proteínas: ele os transfere de molécula em molécula. É desse fluxo controlado que deriva a energia celular.
3. A cadeia transportadora de elétrons: como a comida se transforma em ATP
3.1 A origem dos elétrons: NADH e FADH₂
Os nutrientes ingeridos contêm elétrons de alta energia aprisionados em ligações carbono-hidrogênio (C–H). O catabolismo desmonta essas ligações em etapas sucessivas e transfere os elétrons a dois carreadores:
NAD++2e−+H+→NADH
FAD+2e−+2H+→FADH2
Esse processo ocorre em quatro frentes metabólicas principais (NELSON; COX, 2017):
- Glicólise (citoplasma): glicose → 2 piruvato, com produção de 2 NADH.
- Descarboxilação oxidativa do piruvato (mitocôndria): 1 NADH por piruvato.
- Ciclo de Krebs (matriz mitocondrial): cada acetil-CoA gera 3 NADH, 1 FADH₂ e 1 ATP; portanto, 6 NADH e 2 FADH₂ por glicose.
- Beta-oxidação de ácidos graxos: cada ciclo libera 1 NADH e 1 FADH₂.
Carboidratos e gorduras convergem, assim, para a mesma moeda intermediária: carreadores reduzidos, ricos em elétrons.
3.2 Os quatro complexos da membrana mitocondrial interna
Os elétrons não são transferidos diretamente ao oxigênio — a liberação abrupta de energia resultaria em calor, e não em trabalho útil. A transferência ocorre em degraus, ao longo de complexos proteicos (NELSON; COX, 2017):
- Complexo I (NADH desidrogenase): aceita 2 elétrons do NADH, bombeia 4 H⁺ da matriz para o espaço intermembranar e transfere os elétrons à coenzima Q.
- Complexo II (succinato desidrogenase): único complexo que não bombeia prótons. Recebe 2 elétrons do FADH₂ (via conversão succinato → fumarato) e os encaminha diretamente à coenzima Q — razão pela qual o FADH₂ rende menos ATP que o NADH.
- Coenzima Q (ubiquinona): transportador lipossolúvel que conduz elétrons dos complexos I e II ao complexo III.
- Complexo III (citocromo bc₁): recebe elétrons da coenzima Q, bombeia mais 4 H⁺ e os transfere ao citocromo c.
- Citocromo c: proteína solúvel do espaço intermembranar, que transporta um elétron por vez.
- Complexo IV (citocromo c oxidase): capta 4 elétrons, bombeia 2 H⁺ e os entrega ao oxigênio molecular.
A reação final é a razão bioquímica da dependência de oxigênio:
O2+4H++4e−→2H2O
Na ausência de oxigênio para receber os elétrons, a cadeia é interrompida integralmente — princípio que explica tanto a letalidade rápida da hipóxia quanto o mecanismo de ação de inibidores do Complexo IV.
3.3 A conversão em ATP: força próton-motriz e ATP sintase
O bombeamento de prótons cria um gradiente eletroquímico — a força próton-motriz, da ordem de 180 mV. O retorno dos prótons à matriz ocorre exclusivamente pela ATP sintase (Complexo V), cuja rotação catalisa a conversão de ADP e fosfato inorgânico em ATP.
O balanço energético por molécula de glicose é aproximadamente:
- 10 NADH × ~2,5 ATP = 25 ATP
- 2 FADH₂ × ~1,5 ATP = 3 ATP
- 4 ATP produzidos diretamente
- Total: cerca de 32 ATP
A maior parte da energia utilizada por um organismo aeróbio provém, portanto, desse fluxo de elétrons.
3.4 O efeito colateral: espécies reativas de oxigênio
Entre 1% e 2% dos elétrons escapam prematuramente nos Complexos I e III, gerando superóxido e outras espécies reativas de oxigênio (ROS). Em concentrações elevadas, esse vazamento causa dano oxidativo e está implicado no envelhecimento celular; em níveis moderados, atua como sinalização fisiológica. Esse ponto é decisivo: o próprio dano oxidativo gerado pela respiração é um dos fatores que aceleram o consumo de NAD⁺, fechando um ciclo de retroalimentação descrito adiante.
4. NAD⁺: o carreador central e as três vias de síntese
O NAD⁺ opera em duas frentes simultâneas. Como carreador de elétrons, viabiliza a cadeia respiratória descrita acima. Como substrato enzimático, é consumido por PARPs (reparo de DNA) e sirtuínas (regulação metabólica e epigenética) (BASHSIN et al., 2023). Retirado o NAD⁺ da equação, a transferência de elétrons cessa e a produção de ATP colapsa.
É incorreto, contudo, afirmar que o organismo nasce com uma quantidade fixa de NAD⁺. O corpo mantém três vias ativas de síntese ao longo de toda a vida:
- Via de salvamento (reciclagem): reconstitui NAD⁺ a partir de subprodutos do metabolismo, com participação da enzima NAMPT.
- Via de novo: sintetiza NAD⁺ a partir do aminoácido triptofano.
- Via de Preiss-Handler: utiliza precursores da vitamina B3, como niacina e nicotinamida.
O declínio associado à idade decorre, portanto, do desequilíbrio entre produção e consumo, e não de um destino biológico inexorável.
5. Por que o NAD⁺ declina com a idade
A redução do NAD⁺ resulta da soma de três processos concorrentes:
- Aumento do consumo pela enzima CD38: a CD38 degrada NAD⁺ e tem sua expressão ampliada pela inflamação crônica de baixo grau e pelo próprio envelhecimento, funcionando como um dreno adicional do cofator (BASHSIN et al., 2023).
- Consumo por PARPs: o acúmulo de dano ao DNA ativa as PARPs, que utilizam NAD⁺ como substrato direto. Como a cadeia respiratória gera ROS que lesam o DNA, estabelece-se um ciclo vicioso.
- Redução da reciclagem via NAMPT: a eficiência da via de salvamento diminui progressivamente com a idade.
A evidência humana de referência é o estudo de Massudi et al. (2012), que quantificou NAD⁺ em tecido humano e demonstrou correlação negativa consistente entre o cofator e a idade (r = −0,706 em homens), acompanhada do aumento da atividade de PARP e do estresse oxidativo.
É indispensável, no entanto, apresentar o contraponto: Peluso et al. (2021) revisaram estudos em diferentes espécies e concluíram que a afirmação de que os níveis de NAD⁺ caem de forma global com a idade é sustentada por evidência limitada, frequentemente restrita a um único tecido ou tipo celular. Ou seja: a direção geral do fenômeno é plausível e amplamente aceita, mas sua magnitude e universalidade permanecem mal caracterizadas — sobretudo em humanos e, de modo ainda mais acentuado, em animais de companhia.
6. Suplementação de precursores: o que a evidência sustenta
A suplementação com precursores de NAD⁺ — sobretudo nicotinamida ribosídeo (NR) e mononucleotídeo de nicotinamida (NMN) — é o principal campo de intervenção estudado.
Dois pontos são razoavelmente estabelecidos:
- Segurança e eficácia de dose: os precursores são seguros, toleráveis e efetivamente elevam a concentração de NAD⁺ em sangue e tecidos (FREEBERG et al., 2023).
- Efeitos pré-clínicos consistentes: em modelos animais, a elevação de NAD⁺ melhora metabolismo glicêmico e lipídico, reduz disfunção endotelial e atenua processos neurodegenerativos (BASHSIN et al., 2023).
O que não está estabelecido é a tradução clínica. A revisão de Freeberg et al. (2023) aponta amostras pequenas e protocolos heterogêneos; Bhasin et al. (2023) reforçam que a farmacologia clínica dos precursores permanece mal compreendida; e Vinten et al. (2025), em revisão publicada na Nature Metabolism, questionam a extrapolação direta de dados murinos para o envelhecimento humano.
Elevar NAD⁺ não é sinônimo de comprovar benefício clínico. Essa distinção deve orientar qualquer decisão terapêutica.
7. Aplicações na medicina veterinária
A biologia do NAD⁺ não é exclusiva da espécie humana. Cães e gatos compartilham as três vias de síntese e a mesma lógica de declínio associado à idade, o que abre uma frente de investigação com potencial translacional (OXFORD, 2024).
7.1 Evidência disponível
- Músculo estriado: em modelo canino (golden retriever) de distrofia muscular de Duchenne, o conteúdo de NAD⁺ mostrou-se reduzido no músculo, com alteração da enzima PARP-1; a suplementação com nicotinamida (NAM) reduziu modestamente aspectos da doença muscular (CARDOSO et al., 2023).
- Função cognitiva: ensaio clínico randomizado e controlado em cães seniores com comprometimento cognitivo leve a moderado avaliou a combinação de um senolítico com um precursor de NAD⁺. Houve melhora significativa na escala de avaliação relatada pelos tutores no grupo de dose plena; entretanto, todos os grupos apresentaram melhora, incluindo o placebo, e os testes cognitivos internos não detectaram diferença entre grupos (SIMON et al., 2024). A interpretação exige cautela diante do provável efeito placebo e das limitações metodológicas reconhecidas pelos próprios autores.
- Epitélio intestinal: em células epiteliais intestinais caninas cultivadas, o NMN elevou os níveis de ATP, das enzimas antioxidantes SOD e CAT e da glutationa, reduziu ROS e malondialdeído e aumentou a atividade relativa dos complexos I, III e V da cadeia respiratória (GUO et al., 2026). Trata-se de evidência in vitro — relevante, mas não extrapolável diretamente para a clínica.
- Geroscience veterinária: revisões de medicina veterinária integrativa já incluem moduladores de NAD⁺ entre as intervenções com evidência pré-clínica para alvos do envelhecimento, destacando a necessidade de ensaios de eficácia e de protocolos de monitoramento em animais de companhia (OXFORD, 2024).
7.2 Implicações para a nutrição clínica
As vias de síntese de NAD⁺ dependem de substratos dietéticos diretos: triptofano (via de novo) e vitamina B3 (via de Preiss-Handler). A adequação desses nutrientes na dieta assume, portanto, papel funcional que ultrapassa a simples correção de deficiências — especialmente em pacientes geriátricos, com restrição calórica ou em uso de dietas terapêuticas de baixa densidade energética.
Em pacientes com disbiose e inflamação crônica — como felinos soropositivos para FeLV sob manejo nutricional —, existe um eixo coerente a considerar: a inflamação de baixo grau amplifica a expressão de CD38, elevando o consumo de NAD⁺ e comprometendo a disponibilidade energética de tecidos de alta demanda, incluindo o epitélio intestinal. Os dados de Guo et al. (2026) fornecem suporte mecanístico preliminar a essa hipótese, ainda que restritos ao modelo canino e ao ambiente celular.
7.3 Lacunas e ressalvas clínicas
A literatura veterinária ainda não estabelece dose, frequência, cofatores adjuvantes ou duração de protocolo para precursores de NAD⁺ em cães e gatos. As evidências disponíveis provêm de um modelo genético específico, de um ensaio com produto combinado (senolítico + precursor) e de estudos celulares. Além disso, a comercialização de determinados precursores enfrenta restrições regulatórias variáveis entre países — aspecto que o médico-veterinário deve verificar antes de qualquer prescrição.
8. Discussão
Três pontos merecem ênfase crítica.
Primeiro: o gargalo precisa ser identificado, não presumido. A redução do NAD⁺ é apenas uma entre muitas causas de queda de desempenho e vitalidade. Em medicina veterinária, quadros de hipotireoidismo, disfunções endócrinas, deficiências nutricionais, dor crônica de origem osteoarticular, doença renal e parasitismo devem ser excluídos antes de se atribuir o quadro à depleção de um cofator. A lógica de "medir antes de suplementar" é metodologicamente superior à reposição empírica. Vale destacar, porém, que o monitoramento preciso de NAD⁺ em tecidos de animais de companhia ainda não é uma ferramenta disponível na rotina clínica — o que reforça a necessidade de investigação diagnóstica diferencial convencional.
Segundo: a diferença entre alvo molecular e desfecho clínico. Elevar NAD⁺ é bioquimicamente factível e demonstrado. Converter essa elevação em ganho de massa muscular, melhora cognitiva ou longevidade comprovada é uma etapa distinta, ainda não vencida. O ensaio de Simon et al. (2024) ilustra bem o problema: houve sinal de benefício relatado pelo tutor, mas ausência de diferença nos testes cognitivos objetivos e melhora em todos os grupos. Confundir mecanismo com resultado é o erro central que a difusão comercial desses produtos costuma explorar.
Terceiro: a translação entre espécies é uma hipótese, não um dado. Cães e gatos são modelos potencialmente superiores a roedores pela proximidade fisiológica e pelo envelhecimento acelerado, o que favorece estudos longitudinais. Ainda assim, diferenças de farmacocinética, expressão enzimática e composição da microbiota impedem a simples importação de protocolos humanos. A rigor, nenhum protocolo veterinário baseado em NAD⁺ pode ser considerado baseado em evidências no estágio atual do conhecimento.
Do ponto de vista da medicina veterinária integrativa, a leitura mais defensável é sistêmica: NAD⁺, disbiose intestinal, inflamação crônica e capacidade antioxidante compõem um mesmo eixo fisiológico, no qual a nutrição atua como modulador e não apenas como oferta calórica. Essa perspectiva é consistente com os dados de Guo et al. (2026) no epitélio intestinal canino e abre caminho para intervenções nutricionais com alvo molecular definido — desde que avaliadas com o mesmo rigor exigido de qualquer terapêutica.
9. Considerações finais
A cadeia transportadora de elétrons, o NAD⁺ e o declínio energético associado à idade formam um eixo bioquímico robusto e mensurável, com fundamentos bem estabelecidos: o elétron é a unidade de fluxo energético; o NAD⁺ é o seu carreador central; sua disponibilidade reduz-se com a idade por aumento de consumo e queda de ressíntese; e precursores exógenos elevam seus níveis com segurança demonstrada.
O que falta — e não deve ser substituído por certeza artificial — é a comprovação de desfecho clínico, especialmente em animais de companhia. A postura científica, aqui como em qualquer área, permanece a mesma: medir, individualizar e tratar o mecanismo efetivamente identificado, com transparência sobre o que é evidência e o que é hipótese.
Referências
BASHSIN, S. et al. Nicotinamide adenine dinucleotide in aging biology: potential applications and many unknowns. Endocrine Reviews, v. 44, n. 6, p. 1047-1073, 2023. DOI: 10.1210/endrev/bnad019.
CARDOSO, D. et al. Replenishing NAD+ content reduces aspects of striated muscle disease in a dog model of Duchenne muscular dystrophy. Skeletal Muscle, v. 13, 2023. DOI: 10.1186/s13395-023-00328-w.
FREEBERG, K. A. et al. Dietary supplementation with NAD+-boosting compounds in humans: current knowledge and future directions. The Journals of Gerontology: Series A, 2023. DOI: 10.1093/gerona/glad106.
GUO, X. et al. Nicotinamide mononucleotide modulates endothelin-1 via NR4A1 and histone modifications in canine intestinal epithelial cells. Animals, v. 16, n. 4, p. 591, 2026. DOI: 10.3390/ani16040591.
MASSudi, H. et al. Age-associated changes in oxidative stress and NAD+ metabolism in human tissue. PLOS ONE, v. 7, n. 7, p. e42357, 2012. DOI: 10.1371/journal.pone.0042357.
NELSON, D. L.; COX, M. M. Lehninger principles of biochemistry. 7. ed. New York: W. H. Freeman, 2017.
OXFORD, H. Molecules with pre-clinical evidence of targeting aging in multi-species models for consideration in companion animal medicine. Journal of the American Holistic Veterinary Medical Association, v. 75, p. 11-26, 2024. DOI: 10.56641/KBEV3748.
PELUSO, A. A. et al. Age-dependent decline of NAD+ — universal truth or confounded consensus? Nutrients, v. 14, n. 1, p. 101, 2021. DOI: 10.3390/nu14010101.
SIMON, K. E. et al. A randomized, controlled clinical trial demonstrates improved owner-assessed cognitive function in senior dogs receiving a senolytic and NAD+ precursor combination. Scientific Reports, v. 14, 2024. DOI: 10.1038/s41598-024-63031-w.
THOMSON, J. J. Cathode rays. The London, Edinburgh, and Dublin Philosophical Magazine and Journal of Science, v. 44, n. 269, p. 293-316, 1897.
VINTEN, K. T. et al. NAD+ precursor supplementation in human ageing: clinical evidence and challenges. Nature Metabolism, 2025. DOI: 10.1038/s42255-025-01387-7.
Claudio Amichetti Junior — CRMV 75404 Pós em Nutrição Animal · Pós em Farmacologia · Pós em Cannabis Medicinal
- PETCLUBE AMIGO PET Recuperação ambiental com ciência: 35 anos transformando degradação em Mata Atlântica 🌳🔬
- NUTRIÇÃO CLÍNICA E SAÚDE METABÓLICA EM CÃES E GATOS: ALIMENTAÇÃO REAL, RESISTÊNCIA À INSULINA E ESTRATÉGIAS INTEGRATIVAS
- NAD⁺ e a cadeia transportadora de elétrons: fundamentos bioquímicos, declínio relacionado à idade e perspectivas na medicina veterinária
- EXCESSO DE RAÇÃO COMERCIAL, INATIVIDADE FÍSICA E DÉFICIT DE ENRIQUECIMENTO AMBIENTAL COMO DETERMINANTES DO BALANÇO ENERGÉTICO POSITIVO EM FELINOS DOMÉSTICOS
- TRIGO, GLIADINA E CULTURAS GENETICAMENTE MODIFICADAS: IMPLICAÇÕES PARA O METABOLISMO ANIMAL
- Fibra Alimentar na Nutrição de Cães e Gatos: Fontes, Doses e Aplicações Clínicas
